東大 理学系研究科 生物科学専攻 専門科目 2020年度 院試 過去問 解答例・解説(解説5項目)
解説5項目の分野は生物1項目です。解説は1問、途中式と最終答は大問1問ぶんを公開しています。PDFの収録範囲は商品ページで確認できます。問題本文は含みません。
最終更新:
第1問 — DNAの電気泳動・制限酵素地図と複製フォーク
設問1 翻訳産物・糖・電荷
翻訳は、mRNAのコドンの並びに従ってアミノ酸をつなぐ過程で、産物はポリペプチド、すなわちタンパク質である。DNAをRNAへ写す転写と、RNAの情報をアミノ酸配列へ変える翻訳は異なる。ここで挙げるのはタンパク質をコードするmRNAの経路であり、全てのRNAが翻訳されるという意味ではない。
DNAとRNAの糖は共に五炭糖だが、2′位が異なる。リボースには2′OHがあり、デオキシリボースではその位置がHとなる。塩基のU/Tの違いもあるが、空欄は糖の名称を求めるため、ウをウラシルと答えてはいけない。糖の炭素の番号と、塩基の種類を区別する。
DNAのリン酸骨格は中性付近で負に帯電する。電場中では、負の分子は正の電極へ引かれるため、ウェルから陽極へ進む。多数のリン酸が繰り返されることで、鎖が長いほど負電荷もほぼ比例して増える。ただしゲルでは移動に対する抵抗も長さや形で変わる。
「RNAの糖はウラシル」「DNAは塩基があるので正に帯電」とすると、それぞれ構成要素と電荷の由来を取り違えている。また電極の陽・陰と、溶液の酸性・アルカリ性を同じ名前として扱わない。リン酸の負電荷と陽極への移動という二つを組にして確かめる。
設問2 小さい断片を分離するゲルと時間
ゲルの分子ふるい効果は、網目を通る際の抵抗が分子の大きさで違うことを利用する。アガロースの濃度を上げると一般に網目が細かくなり、小さい断片の長さの差も移動度の差へ現れやすくなる。0.3と0.4 kbpという近い小断片を、薄い網目のまま短時間で流す条件を改善する問題である。
移動度を、電場をとすると、一定条件での移動距離の差はである。時間を伸ばせば差を大きくできる。網目で分離の選択性を改善し、それを距離の違いとして読む時間も長くするため、カを選ぶ。
ただし時間を無限に延ばせばよいわけではない。小さい断片がゲルの外へ出る、拡散でバンドが広がるなどの制約がある。濃度を上げ過ぎれば移動が遅くなるので、対象に合う範囲で調節するという一般的な選択であり、この資料だけから最適な数値濃度を決める必要はない。
原条件の電場の目安は V/cmで、選択肢は電圧を変えていない。「濃度を下げれば速く走るので分離も必ず良い」とすると、速さと二断片の分かれやすさを混同する。時間を短くするクでは、網目を変えても距離差を広げる方向に働かない。選択肢の二つの変更がそれぞれ何を変えるかで比較する。
設問3 同じプラスミドでも形で移動度が違う
プラスミドは通常、環状の二本鎖DNAである。両鎖が切れずに閉じていると、ねじれが超らせんとして保たれ得る。一方の鎖にニックが入ると回転によってねじれが緩み、同じ塩基対数でも空間的に広がった形となる。二本のバンドを、異なる長さの二種類の挿入DNAと直ちに解釈しない。
線状DNAのサイズマーカーでは、同じような形の断片を長さで比較する。未切断の環状DNAは形が違うため、マーカーの位置をそのまま塩基対数へ換算できない。超らせん型が小さくまとまって網目を通りやすいこと、開環型が大きく広がって抵抗を受けることが、二本の移動差の説明となる。
原題の未処理の上のバンドは遅い開環型、下のバンドは速い超らせん型に対応すると考えられる。実際の移動の順序はゲルやDNAの大きさなどでも変わるが、本問では典型的な二形態を説明する。制限酵素で一定の場所を切って線状断片へすれば、形の影響を減らして長さの比較ができる。
「上のバンドが約6 kbpだから、下のバンドも別の5 kbpプラスミド」とするのは、形の違いをサイズ差へ読み替えている。また開環型を二本鎖が全て解離した一本鎖DNAとするのも誤りである。一鎖の切れ目と、塩基対でつながる二本鎖の状態は両立する。長さを保ったまま形が変わるかを確認する。
設問4 全ての切断長を同時に満たす環状地図
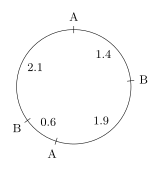
環状DNAを二箇所で切ると、環を二つの弧に分けた断片が得られる。Aだけの長さは3.3と2.7 kbp、Bだけでは3.5と2.5 kbpで、どちらも和は6.0 kbpである。まず全長が一致することを確かめ、二重切断の四断片がこの二分割を同時に再現するように並べる。
Aの一方の弧3.3は、他方2.7はと作れる。従って、それぞれのA--A間にBの部位が一つ入る形を考える。次にB--B間を読むと、、となり、B単独の結果も再現できる。二重切断の和もで一致する。
地図には開始点の絶対位置や、紙上の時計回りの向きという固有の意味はない。同じ弧の隣接関係を保った回転・反転は、同じ切断結果を与える。実際の配列の方向まで決めるには別の情報が要るが、この問題は制限酵素部位の間隔の地図を求めている。
「二重切断の断片を大きい順に並べる」と、例えば隣の二断片がA単独の3.3と2.7を作れず、条件を満たさない。また解答例の数字をそのまま使うのも誤りである。図は書き方の例であり、用いるべき実測長は本文に指定された値である。自作図の四つの弧と、A・Bそれぞれを取り除いた時の二つの和で検算する。
設問5 二本とも合成方向は同じである
DNA合成では、既存の鎖の末端3′OHが、入ってくるdNTPへ反応してホスホジエステル結合を作る。そのため伸長する向きは5′から3′であり、鋳型鎖とは逆平行となる。通常の複製酵素は何もない所へ最初のヌクレオチドをそのまま作り始められず、プライマーの末端を必要とする。
二本鎖の鋳型は逆向きなので、同じフォークから見た二本の鋳型の向きも反対になる。一方では鋳型が3′から5′へ露出し、酵素がフォークと同じ方向へ進みながら連続して伸ばせる。もう一方では、同じ合成方向を守るとフォークから離れる向きになるため、新しく露出した場所で何度もプライマーを作り、短い断片として合成する。
ラギング鎖の断片も、個々には全て5′から3′へ伸びる。プライマーを除いてDNAへ置き換え、隣接する末端をリガーゼで結ぶことで、最後には連続した一本の鎖となる。従って最終的な連続鎖という結果と、合成途中の不連続さは矛盾しない。
「ラギング鎖は3′から5′へ合成される」とすれば、鋳型を読む向きと新生鎖の伸びる向きを逆にしている。「リーディング鎖だけプライマーを使う」という記述も、ラギング鎖で開始を繰り返す条件と合わない。鋳型と新生鎖の5′・3′を反対向きに置き、二本とも伸長末端が3′となることを確かめる。
設問6 一定位置で一時停止した複製フォーク
複製フォークは、まだ複製されていない二本鎖の幹から、複製された二本の娘二本鎖が分かれるY字構造として見える。親DNA上の対応する長さは「幹+片側の枝」であり、DNA物質の総量は「幹+両方の枝」である。この違いにより、枝分かれした分子は同じ親領域の線状断片より多くのDNAを含む。
bでは親領域が kbp、cでは kbpとなり、A切断の二断片へ対応する。物質量に対応する長さはそれぞれ、 kbpで、さらに分岐形態の影響もあるため、線状サイズマーカーから直接「枝の位置」を読めない。
どの場所でも同じ速さで通過するなら、複製中の少数の分子には様々なフォーク位置がある。特定の幹・枝長の分子がバンドとして集まるのは、その位置での滞在時間が長いことを示唆する。原題の一方向複製という条件のもとでは、方向が二つあることだけで二バンドを説明しない。
ただしバンド一枚だけから停止時間の絶対値や阻害タンパク質名まで決まるわけではない。設問の四候補では特定位置の一時停止が最も合う、という推論である。「枝長を二本とも足して親断片を5.4 kbpとする」と、A断片3.3・2.7への対応を失う。親領域の長さと、複製後のDNA総量を分けて選ぶ。
設問7 一定長の中間体と完成した分子を合わせて読む
ある構造を観察する確率は、その構造が生じる頻度だけでなく、その状態で過ごす時間にも依存する。中間体を同じ速さで作っていても、ある段階が遅ければそこにいる分子が増える。この滞在時間の考え方が、薄いが特定位置に現れる二バンドを複製の停止と結び付ける根拠である。
二つのY字の親領域長が、A単独で切った二断片に対応することは、無関係な二種類の長い挿入DNAより、複製された同じ領域という解釈に合う。幹と枝の長さがまとまることは、少なくとも二種類の特定のフォーク位置への蓄積を示唆する。これを「全ての位置で無作為に永久停止する」と読めば、位置がそろう特徴を説明できない。
一方、完成した通常の断片も残り、細胞が増殖している。全ての複製フォークが必ず永久に進めなくなるモデルでは、新しい完成分子を供給できず、通常の増殖に伴う維持を説明しにくい。したがって選択肢の中では、止まりやすい場所を通過して複製を終える一時的な障害が適切となる。
「通常のバンドがあるだけで、個々の全フォークが必ず再開したと直接観測した」とまではいえない。再開の時間経過を追えば、この推論をさらに確かめられる。また阻害の原因を原題にない特定の酵素と断定しない。一定位置への蓄積、複製に依存する出現、完成分子との共存という別々の観察を組み合わせる。
設問8 方法1:遺伝子を失わせて機能を調べる
機能喪失の実験は、ある因子を減らした時に何ができなくなるかを問う。生存、複製中間体、特定条件への応答などを正常型と比べれば、その因子が必要な過程の候補を得られる。欠損が致死なら、完全欠損の生存株を当然に作れるとせず、条件付きの抑制などで作用する時点を限定する。
ただし欠損株に異常があることだけでは、目的遺伝子以外の変化の可能性が残る。独立した変異体や、正常遺伝子を適切な量で戻す相補の確認を組み合わせる。異常が回復すれば標的遺伝子との関係を強くできるが、過剰発現による非特異的な救済は別に評価する。
原題の染色体領域が複製へ影響するなら、欠損でフォークの停止が増減するかを一つの表現型として比べられる。ただし隣の遺伝子への作用や、DNAの配列自体を消した効果もあり得る。タンパク質の機能だけを問うには、翻訳を変える変異などとの比較も役立つ。
「欠損して生存したので、そのタンパク質は何の役割もない」とするのは誤りである。他因子の重複や、実験していない条件での作用があり得る。また一個の変異株の増殖不良だけで直接DNAへ結合する機能と断定することもできない。必要性を測る実験という範囲を守り、回復と独立性で確かめる。
設問8 方法2:局在と相互作用から作用場所を絞る
分子の機能は、どこにあり、何へ接近できるかによって制約される。DNAを扱うタンパク質ならDNAのある場所で作用する機会が必要であり、膜へ局在する因子なら膜上の相手との関係が候補となる。局在は機能そのものの測定ではないが、可能な機構を絞る情報になる。
蛍光タンパク質との融合や抗体による検出では、標的が通常の量と状態で検出できるかを確認する。融合位置が結合面や局在配列を塞ぐ、過剰な量で本来と違う場所へ集まるなどの影響があるため、正常の表現型を保つ標識が必要である。
相手分子を調べる方法では、同じ複合体に含まれるか、精製した二成分だけでも結合するか、という問いを分ける。同じ細胞内の場所に見えること、共に回収されること、直接結び付くことは、順に異なる証拠である。対照で非特異的な付着を除き、機能喪失の結果とも照合する。
「蛍光の点がDNAの点に重なるので、直接DNAを切る酵素」とするのは、空間的な近さから活性まで飛んでいる。またタグなしの対照まで同じ相手が回収されるなら、特異的相互作用とは解釈しにくい。
設問8 方法3:精製した分子で作用を再構成する
細胞内の欠損の効果は間接的にも起こるが、精製系では相手や基質を限定できる。例えばDNAへの結合なら、タンパク質の量を変えた時に自由DNAと複合体の割合がどう変わるかを調べる。
1対1結合の単純な平衡ではであり、自由濃度を使って親和性を比較できる。配列の異なるDNAや結合部位の変異を比べれば、どの特徴が認識へ関わるかを問える。ただし細胞内の複製停止を再構成するには、結合以外の複製装置や条件も必要である。
仮に精製タンパク質だけで特定のDNAへ結合しても、その結合が生体で必要とは限らない。欠損・相補の結果、局在、細胞内での結合情報などへ戻って照合する。精製状態での折り畳みや、必要な補因子の不足による偽陰性も条件として考える。
「配列が既知の酵素に似ているので活性測定をしたのと同じ」とするのは、予測と実験を取り違えている。またタンパク質なしでも起きるDNAの変化を標的の活性と呼ぶこともできない。
解答
設問2 小さい断片を分離するゲルと時間
小さい断片に合った細かい網目にし、移動度の差がバンド間の距離へ現れる時間を取る。
設問3 同じプラスミドでも形で移動度が違う
二本鎖が共有結合で閉じた超らせん型と、一方の鎖に切れ目が入ってほどけた開環型が主に考えられる。後者は広がった形で移動が遅く、超らせん型は一般に小さくまとまるため速く移動する。
設問4 全ての切断長を同時に満たす環状地図
一例として、環を次の順に配置する。回転や左右反転した同じ地図も正解である。
設問5 二本とも合成方向は同じである
DNA合成酵素はプライマーの3′OHから鎖を5′→3′方向へ伸ばし、鋳型を3′→5′方向へ読む。リーディング鎖は複製フォークの進む向きへ連続的に合成される。一方、ラギング鎖は短い岡崎フラグメントを繰り返し合成し、プライマーの除去・置換後に連結する。
設問6 一定位置で一時停止した複製フォーク
一定の幹・枝長を持つY字構造が蓄積していることから、複製フォークが特定位置で止まりやすいと考える。完全な永久停止で全ての複製が終わらないという説明より、増殖中も完成したプラスミドが保たれる観察に合う。
設問7 一定長の中間体と完成した分子を合わせて読む
枝の長さが一定の二種のY字分子が蓄積し、それぞれ幹と一枝の和がAの3.3、2.7 kbp断片に合うので、決まった位置に滞在する複製中間体と考える。完成した断片も多く存在し、増殖中にプラスミドが保たれているので、一時的な停止として説明できる。
設問8 方法1:遺伝子を失わせて機能を調べる
標的遺伝子の欠損や条件付きの発現抑制を行い、増殖や複製などの表現型を比較する。正常遺伝子を戻して異常が回復するかも調べ、標的の機能との因果を確かめる。
設問8 方法2:局在と相互作用から作用場所を絞る
蛍光標識や抗体でタンパク質の細胞内局在を調べ、DNAや他タンパク質との相互作用も解析する。標識が機能を壊していないことを確かめ、候補となる作用場所と相手を絞る。
設問8 方法3:精製した分子で作用を再構成する
タンパク質を精製し、DNAとの結合や、複製反応への影響などを構成要素の分かった系で調べる。タンパク質なし、変異型、非標的DNAなどの対照と比較して、直接の作用を評価する。
最終答
ア:タンパク質、イ:デオキシリボース、ウ:リボース、エ:負、オ:陽。
カ:アガロース濃度を上げ、泳動時間を長くする。
ス:特定の場所で複製を一時的に阻害する性質。
第2問 — 神経分泌と速い・遅い受容体応答
神経分泌と速い・遅い受容体応答の途中式・最終答をPDFで見る第3問 — アミノ酸の化学・DNA結合とSDS-PAGE
アミノ酸の化学・DNA結合とSDS-PAGEの途中式・最終答をPDFで見る第4問 — 転移因子・メチル化の維持と斑入りの遺伝
転移因子・メチル化の維持と斑入りの遺伝の途中式・最終答をPDFで見る第5問 — 分野別選択問題:13小問の全設問
分野別選択問題:13小問の全設問の途中式・最終答をPDFで見る年度別の解答例(6年度)
分子生物学:遺伝子発現の段階とホルモン応答の実験 / 分子生物学:配列決定の原理と反復配列の解析 / 細胞生物学:細胞内輸送と増殖・細胞死の制御
分子生物学:転写因子の修飾と発生時の神経再構成 / 分子生物学・生化学:tRNA合成の特異性と校正 / 細胞生物学:核輸送と核膜の動態
分子生物学:複製の正確性と細胞系譜の追跡 / 細胞生物学:微小管と膜上の局所パターン / 生化学:膜輸送の自由エネルギーと精製
分子生物学:クロマチンと転写因子の条件依存性 / 細胞生物学:増殖・酸素供給・ATPの収支 / タンパク質の構造と非酵素的な卵膜の溶解
2020年度(このページ・解説5項目)
DNAの電気泳動・制限酵素地図と複製フォーク / 神経分泌と速い・遅い受容体応答 / アミノ酸の化学・DNA結合とSDS-PAGE
ゲノム・RNAと分化の発現制御 / 細胞骨格と分岐したアクチンの重合 / タンパク質の精製と自己リン酸化
2020年度の出題内容
解説5項目
前年度(2019年度)との違い
- 大問数
- 2019年度 10問 → 2020年度 5問
東京大学の公式過去問
- 公開年度範囲
- 2015〜2020・2023〜2026(公開筆記問題)
- 公式の解答例
- 解答例の掲載なし
- 英語の扱い
- ここでは専門科目の過去問を扱う。英語の受験方法は当該年度の募集要項で確認。
- 院試hubの最終確認
- 2026-10-20